








甲基化在放大效应中的作用:调整下式的 KdK_d,
X∗Xmax=11+(S/Kd)n(1)\frac{X^*}{X_{\max}} = \frac{1}{1+(S/K_d)^n}\tag{1}
也就是接收到的信号和最终放大到的信号之间的比值是一个 Hill 函数. 甲基化使得 Hill 函数图像的快变区域变化,也就是根据测量结果来改变系统的状态,使得响应适应外界环境的变化,始终保持灵敏. 如果有 mm 个甲基,那么根据 Boltzmann 分布律大概可以估算
Kd∝e−βΔF(m)∼eγmK_d\propto e^{-\beta\Delta F(m)}\sim e^{\gamma m}
甲基化的方程为
dmdt=VRR−VBBX∗(2)\frac{\text{d}m}{\text{d}t}=V_RR-V_BBX^*\tag{2}
(mm 是甲基个数,VRV_R 和 VBV_B 分别是甲基化和去甲基化的作用效率.) 上述两个方程合在一起,得到每次环境发生变化时,甲基化的个数会改变到一个稳定值.
注意
也就是,甲基化是一种「memory」,表征了外界当前的背景信号是多少. 这和 Maxwell's Demon 不谋而合,记忆由外界而改变,产生熵.
甲基化的「记忆」取决于外部背景信息的倍数关系 (而不是绝对值),有
dK~dt=cK~(ass−a)\frac{\text{d}\tilde K}{\text{d}t} = c\tilde K(a_{ss}-a)
普遍地总结是所谓的 Weber-Fechner law,也就是生物的感知系统都是感知相对变化,比如声音的单位就是分贝,这是一个对数单位.
下面我们来说生物网络之间的运作.
中心法则:
下面这个网络就是海胆的很多个基因之间的相互作用关系:
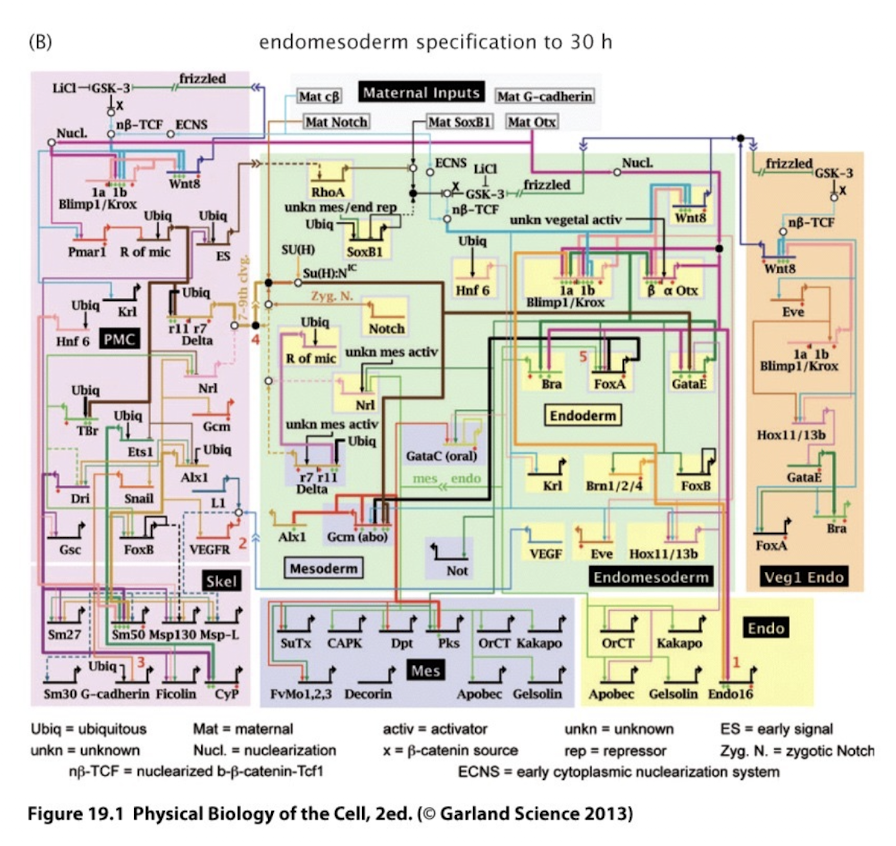
转录过程的方程:
dp(m,t)dt=−kp(m,t)‾m→m+1+kp(m−1,t)‾m−1→m−γmp(m,t)‾m→m−1+γ(m+1)p(m+1,t)‾m+1→m\frac{\text{d}p(m,t)}{\text{d}t} = -\underset{m\to m+1}{\underline{kp(m,t)}}+\underset{m-1\to m}{\underline{kp(m-1,t)}}-\underset{m\to m-1}{\underline{\gamma mp(m,t)}}+\underset{m+1\to m}{\underline{\gamma(m+1)p(m+1,t)}}
边界条件是 p(m<0,t)=0p(m<0,t)=0. 这是一个可解的线性方程,其中 γ\gamma 是 mRNA 的 lifetime.
下一个时刻的 mRNA 数量变化相对速度和这一时刻的没有关系,因为转录和降解都和 mRNA 当前数量无关. 在 DNA 未激活的状态下,mRNA 只有降解效应;仅仅在 DNA 激活状态下才有 mRNA 的增加和因此产生的减少.
Gillespie Algorithm:一种无偏的随机模拟算法.
背景是,考虑反应 A⟷BA\longleftrightarrow B,正向速率为 k1k_1,反向速率为 k2k_2,我们想要模拟知道 t→t+Δtt\to t+\Delta t 时间内,这个反应发生的概率.
常用的 Monte-Carlo 方法是,取一个 k1Δtk_1\Delta t 和一个 k2Δtk_2\Delta t 在 [0,1][0,1] 之间,然后每一次取两个随机数 ξ1,ξ2∈(0,1)\xi_1,\xi_2\in(0,1). 如果 ξi>kiΔt\xi_i> k_i\Delta t,那么这个反应发生;反之不发生. 如果两个同时发生或者同时不发生,那么相当于什么也没做. 之后再进行下一步.
但是这种传统手段的问题是,我们需要很小的 Δt\Delta t,但是不能太小以保证能够计算出结果.
Gillespie 的想法是,对一个指数分布 eτ/(k1+k2)e^{\tau/(k_1+k_2)} 采样:因为
P0(Δt+dt)=P0(Δt)(1−∑ikidt)⟹P0(Δt)∼e−∑ikiΔtP_0(\Delta t+\text{d}t) = P_0(\Delta t)\left(1-\sum_ik_i\text{d}t\right)\Longrightarrow P_0(\Delta t)\sim e^{\displaystyle{-\sum_ik_i\Delta t}}
所以每一次先从上面这样的指数分布 eτ/(k1+k2)e^{\tau/(k_1+k_2)} 里面产生一个 τ\tau (反应间隔时间),然后产生完间隔时间之后再掷一次骰子,决定一个 (0,1)(0,1) 的随机数和 k1/(k1+k2)k_1/(k_1+k_2) 之间的大小关系,如果是大于那么反应反向进行、小于那么反应正向进行,最终得到一个「每次时间间隔不均匀」的时序曲线.
8390e-feat(note): add note于 此内容由惯性聚合(RSS阅读器)自动聚合整理,仅供阅读参考。 原文来自 — 版权归原作者所有。